Os Hexapoda tem esqema corporal dividio em três tagmas: cabeça ou cephalon, tórax e abdomêm. A cabeça possuí cinco segmentos pós ácron, um par de antenas no primeiro segmento, mandibula no terceiro segmento e duas maxilas nos quarto e quinto segmentos. O terceiro segmento da cabeça nos hexapoda possuí uma estrutura interna que pode ser também derivada do apêndice ancestral chamada hipofaringe ou super-lingua.
A hipofaringe é uma sinapomorfia de Hexapoda mais Myriapoda, grupo que recebe os nomes de Uniramia, Tracheata ou Artelocerata. Como o próprio nome já diz tanto Myriapoda quando Hexapoda possuem estruturas respiratórias chamadas traqueas, que nada mais são que tubos respiratórios que se abrem em orifícios chamados espiráculos e levam o ar diretamente aos orgãos. Embora as traqueas de Myriapoda e Hexapoda sejam provavelmente homólogas há também a presença de estruturas semelhantes, não homólogas, que recebem o mesmo nome em alguns Cheliceriromorpha, de modo que este não é o melhor nome para o grupo por se tratar de uma estrutura convergente.
Como também nos informa o nome do grupo mais inclusivo, Uniramia, os Hexapoda possuem apêndices uni-remes, ou seja, com um único ramo. Isso é verdade para o primeiro par de apêndices locomotores e para as antenas, contudo a certa discussão acerca da origem das asas como provável exito da epicoxa dos segundo e terceiro pares de apêndices locomotores dos Pyterigota. Uma discussão sobre a adequação da nomenclatura Uniramia será melhor discutida aqui.
Os Hexapoda podem ser didáticamente divididos de acordo com seu metabolismo em três grandes grupos: os Ametábula, os Hemimetábula e os Holometábula, dos quais apenas o último é monofilético. Grande parte da variedade de Arthropoda reside neste grupo e dentro de Holometábula por razões que serão discutidas mais adiante. Abordaremos dentro de Hexapoda os “Entognata”, os Paleoptera e as ordens mega diversas de Holometábula ou Endopterygota (dentro de Neoptera).

Figura A - Hexapoda, onde pode-se ver as 6 pernas e o tagma divido em 3, Neuroptera
“Entognata”
São ametábulos e portanto ápteros (não possuem asas). Podem ser facilmente diferenciados de insetos verdadeiros através de seus apêndices locomotores que terminam em uma única garra, enquanto que os Insecta possuem ao menos duas garras terminais. Possuem peças bucais mastigadoras e internas, caracteristica que dá nome ao grupo.
“Entognata” é um grupo parafilético dividido em Diplura e Parainsecta, sendo o último grupo dividido em Protura e Collembola. Parainsecta pode ou não ser um grupo monofilético.
Diplura são pequenos e possuem dois cercos, estruturas que dão o nome ao grupo. Não são pigmentados e não possuem estruturas sensoriais relacionadas a visão. Podemos nos perguntar se estas caracteristicas são semelhantes ao do plano básico de Hexapoda ou se são, na verdade, reduções, sendo que a segunda hipótese é mais parciomoniosa dada a existencia de olhos em todos os outros grupos de Arthropoda. Também possuem vesículas eversíveis no abdômem, provavelmente relacionadas com regulação osmótica.
Protura, como Dipluras, não possuem olhos, mas são marcados adicionalmente pela redução das antenas. O primeiro par de pernas é modificado e toma a função sensorial que corresponderia as antenas, ficando sempre em frente ao restante do corpo. São também pequenos, da ordem de milimetros, e vivem principalmente em micro-habitats úmidos.
Collembola são popularmente conhecidos como springtails (“cauda de mola”) por conta de uma estrutura chamada fúrcula que se dobra por sob o abdome e se desdobra rapidamente proporcionando um salto usado para escapar de predadores. Tem um abdome reduzido, com apenas seis segmentos, oq ue pode facilitar a sua distinção dos insetos verdadeiros. São predadores de insetos verdadeiros, de outros Collembola e também de pequenos Myriapoda. São os Hexapoda de registro fóssil mais antigo datando do Devoniano.

Figura 1 - Collembola, vista dorsal
Paleoptera
Como o nome sugere são os insetos pterigotos (portadores de asas) mais antigos. Suas larvas são exclusivamente aquáticas e possuem desenvolvimento hemimetábulo, mas não são os únicos a apresentá-lo, caso no qual Hemimetábula poderia ser considerado monofilético. De fato há varios grupos de Neoptera que são também hemimetábulos, isto é possuem o desenvolvimento das asas acompanhando sua maturação sexual, como por exemplo Blatodea e Hemiptera.
Ao contrário dos Neoptera estes insetos não são capazes de dobrar suas asas por sobre o abdome, o que sugere que as asas de Paleoptera podem ter surgido de maneira independente. Também podemos aceitar um ancestral comum de Paleoptera e Neoptera com asas mais semelhantes ao primeiro que tardiamente ganham as articulações necessárias ao dobramento. Em ambos os casos as asas dos dois grupos são homólogas se aceitarmos a origem branquial delas (veja mais aqui). O monofiletismo do grupo é aceito, embora controverso. Há hipóteses que o consideram parafilético com Ephemeroptera ou Odonata com um ancestral comum compartilhado mais próximo em relação aos Neoptera.
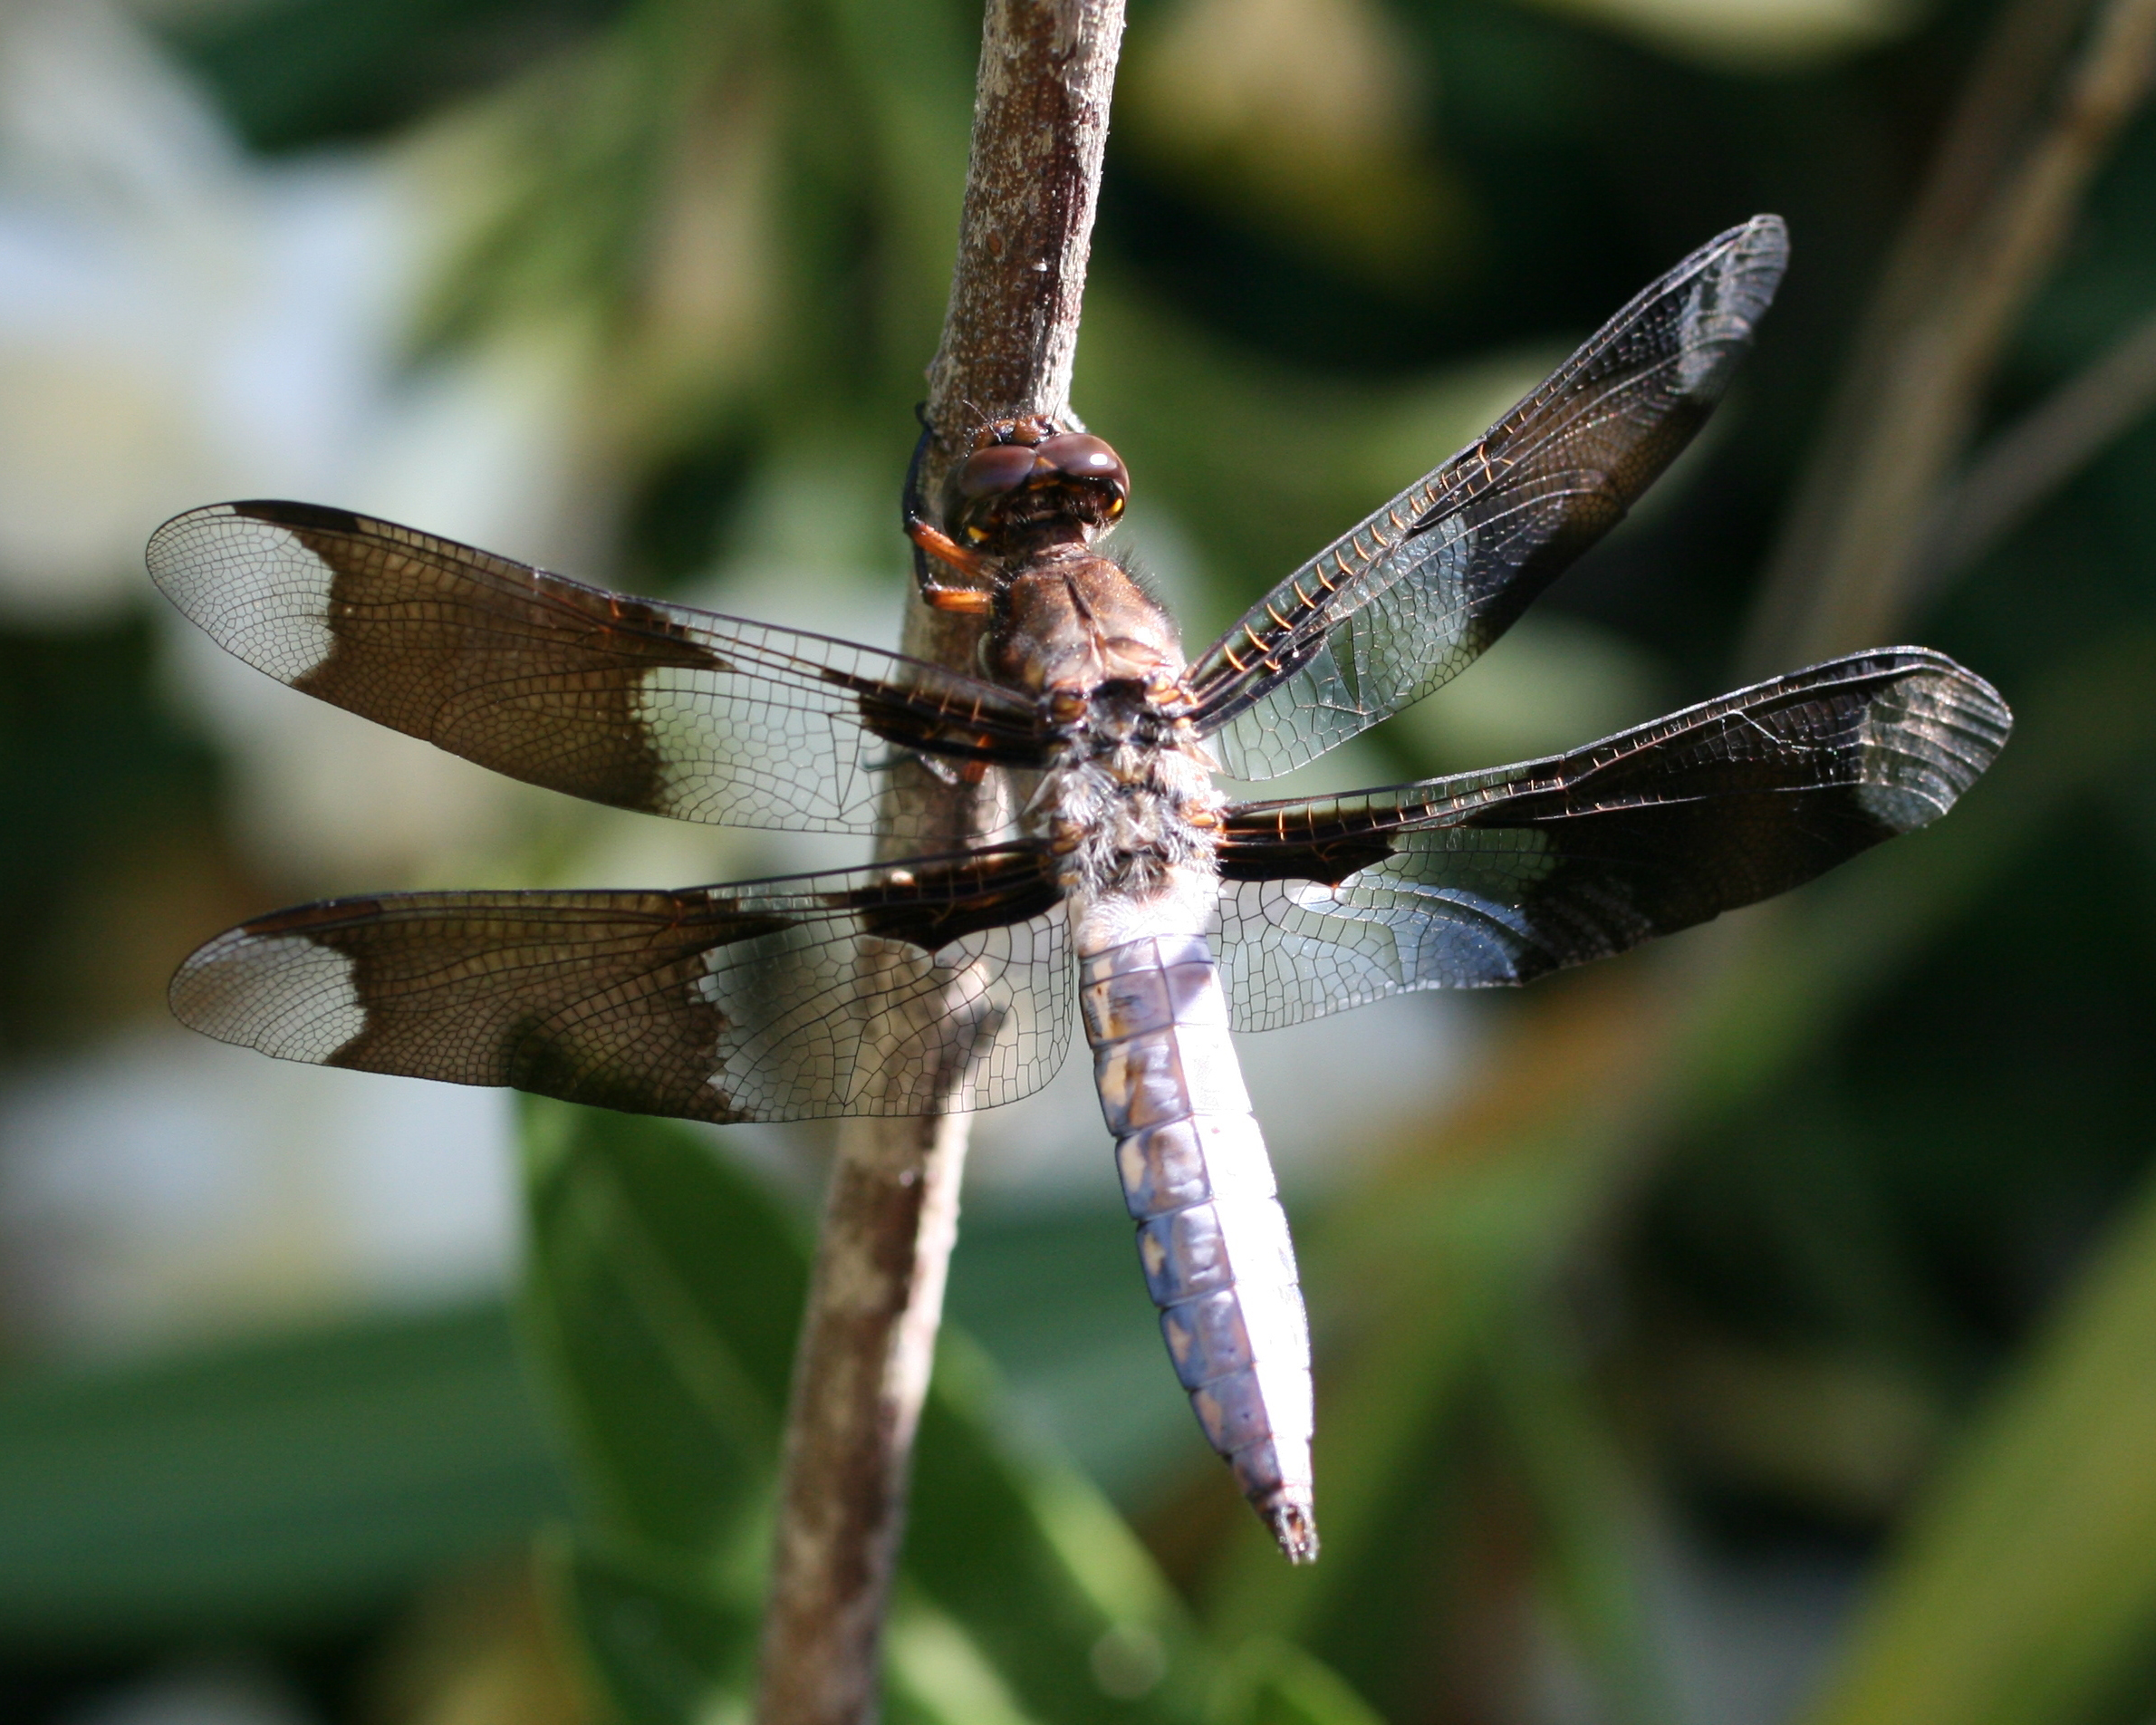
Os Odonata são comumente chamados de libélulas. São predadores carnivoros em seus dois estágios de desenvolvimento. A larva possuí uma estrutura labial extensível para a captura de presas e se alimenta de pequenos peixes. Os adultos tem voo rápido e são extremamente territorialistas. Seu abdome é alongado e flexível, podendo dobrar-se durante a cópula. Suas asas permanecem sempre perpendiculares ao corpo.
Ephemeroptera recebem este nome dada sua fase adulta de vida extremamente curta, durante a qual os imagos sequer se alimentam. Em sua maioria possuem filamentos abdominais mais ou menos longos, e as ninfas apresentam brânquias traqueais. São os únicos insetos com asas a ter mais de um estágio adulto.

Figura 2 - Odonata
Holometabula
Única forma de metabolismo que é sinapomorfia caracteristica de um grupo monofilético, o holometabolismo é a alteração completa do padrão corporal do jovem para o adulto. O adulto é chamado Imago como nos outros grupos e possuí asas completamente formadas. Os jovens são chamados larvas, geralmente animais vermiformes e cilíndricos de corpo mole, e passam por um estágio de pupa em que sofrem de maneira pontual todas as mudanças que os transformam em adultos. Dada a formação das asas no interior de um invólucro o grupo é também chamado Endopterygota.
Grande parte da diversidade dos Arthropoda (e da vida na Terra) está neste grupo de insetos. Isso pode ser explicado primeiramente pela presença de asas nos Pterygota, que permitem maior dispersão e constituem vantagem evolutiva na busca por alimentos. A própria dispersão proporcionada pelas asas favorece eventos de segregação gênica e especiação devido a diferentes pressões seletivas. Os Holometábula são particularmente mais diversos dentro dos Pterygota dada a metamorfose que sofrem. Por conta da larva e do imago ocuparem nichos ecológicos completamente diversos eles raramente competem por alimento, permitindo que uma geração jovem chegue ao estágio de imago sem sofrer pressões por conta da população adulta.
Aqui trataremos as quatro ordens mega-diversas de insetos: Coleoptera, Lepdoptera, Hemynoptera e Diptera. Mas é óbvio que existem muito mais ordens de Holometabula.

Figura B - Casulo de Lepidoptera
Coleoptera
É o grupo que engloba todos os bezouros e a maior das ordens mega-diversas contituindo 40% da diversidade no planeta Terra.
O primeiro par de asas dos Coleoptera é modificado em élitros rigídos que protegem o segundo par de asas, estas membranosas e úteis ao voo. Os élitros são uma ferramenta importante na identificação das famílias de Coleoptera, na maioria das familias eles sobrem todos os segmentos abdominais ou deixam de fora apenas o pigídeo. O número de segmentos deixados descobertos pelo élitro é caracter diagnóstico de muitas familias onde a cobertura completa não se verifica. A coloração dos élitros também são caracteres diagnósticos.
A tagmose de Coleoptera geralmente sofre uma peculiaridade, com o protórax (primeiro segmento do tórax) mais pronunciado, e o mesotórax e metatórax (segundo e terceiro segmentos no tórax) normalmente fundidos e recobertos pelos élitros.
Eles possuem cabeças arredondadas, ou podem apresentar cabeças alongadas em um rostro. Em ambos os casos as peças bucais são mastigadoras, mas podem ser afiadas e delgadas conjugadas com um sulco pelo qual o besouro suga liquidos corporais das presas ou linfa dos vegetais. Há espécies herbivoras de interesse comercial por atacarem grãos, e também espécies carnívoras que predam outros insetos e pragas (ao exemplo das joaninhas). Alguns também podem ser necrófagos, como os famigerados escaravelhos. Há uma articulação membranosa entre a cabeça e o tórax presente em todos os bezouros que forma uma espécie de ‘pescoço’. Os olhos compostos estão na lateral da cabeça e as antenas são de tamanho e número de articulos variados, constituindo outro importante caráter identificador.
As larvas são vermiformes e geralmente brancas, não possuem apêndices locomotores ou já possuem três apêndices locomotores. Geralmente há ocelos presentes nas larvas, caracteristica que se mantém em poucos adultos. Possuem habitats bem variados, as vezes aquáticos ou semi-aquáticos, alguns subterrâneos e outros vivem em associação com ninhos de insetos sociais.

Figura 3 - Escaravelho-veado, Coleoptera
Lepidoptera
As borboletas e mariposas sempre encantarama humanidade ao longo dos tempos. Seu colorido, sua associação com as flores e seu modo de voo, são atarentes e agradáveis. Sua metamorfose, embora seja algo comum aos Holometabula, é muito associado aos Lepidopteras. A lagarta virando um casulo e virando um indivíduo alado, embora se deem em muitos insetos, são quase sempre associado aos lepidópteros. Talvez por suas lagartas serem vistosas e gerarem problemas na agricultura, seu casulo ser fácil de se localizar e pela saída dele de um indivíduo com asas muito desenvolvidas e muito diferente da forma larval.
Mas sua principal característica, única oas Lepidoptera, é a presença de uma probóscide enrolada. Neste grupo as duas maxilas se alongam e se unem em um tubo enrolado que serve para sugar néctar, a espirotromba. Ela pode se expandir consideravelmente explicado pela sua forma enrolada funcionando com o briquedo "língua-de-sogra". Não estão presentes mandíbulas.
A outra principal característica do grupo é a presença de escamas. O nome Lepidoptera vem desse caracter, pois ele significa asas com escamas. Pode-se observar a presença delas quando se passa amão sobre uma asa de borboleta ou mariposa e fica na sua mão um pó fino. Elas são células hipodérmicas acahatadas que podem estar muito abundantes numa asa. A difração da luz por estas células causa cores muito vivas e peculiares, chamadas de cores estruturais, e estas dão mais beleza ao voo de um Lepidoptera. Mas eles são capazes de porduzirem pigmento colorante no corpo fazendo as cores pigmentares. A fusão dessas cores associado ao movimento da asa faz com que este grupo seja visualmente bem característico e produza fenômenos luminescentes bastante claros.
Eles em geral apresentam corpo mole associado mais a uma continução do polano estrutural das lagartas. Isto facilita muito o voo. O voo alias é uma excelente vantagem usada amplamente pelas borboletas e mariposas. Seu corpo relativamente leve e é pequeno quando comparado às asas. Estas, são 4 asas distintas, embora alguns grupos tenham feito elas se aproxiamrem tanto que quando o animal está se movimentando parece que são apenas 2. Esta aproximação se dá pois há uma tentativa em Lepidoptera de possuírem asas com área de superfície muito grande quando comparado a área corporal. Este aumento na área facilitou o voo suave com paradas em flores de maneira sutil. Como são sugadores e não caçadores, não precisam de muita velocidade, mas sim estabilidade, sendo que algumas Lepidotera nem pousam na flor para sugar seu néctar.
A lagarta dos Lepidopteras são bem caracterísiticos. Como citado acima, eles, como na maioria das fases larvais, apresenat corpo mole. Eles comem muito depois da eclosão, e aumentam de tamanho muito mais rápido que outros animais chegando a multiplicar seu peso corpóreo em pouco tempo. Elas ingerem muita quantidade de matéria orgânica vegetal e isso é um sério problema em algumas palntações. Para evitar um paradoxo, é controaldo naturalmente a predação de folhas pelas lagartas, a produção de néctar oferecido aos adultos e a polinização das flores. De tamanho alimento ingerido, algumas espécies o adulto nem chega a se alimentar. Algumas possuem cerdas urticantes para a defesa, pois as larvs são muito predadas. Um lepidoptera tem que botar milhares do ovos porque a maioria não chegará à fase adulta. É visto também nas lagartas a presença de falsas pernas, apêndices mais parecidos com lobopódios que em pernas surgindo em diversos segemntos que auxiliam a locomoção destes bichos nos ínstares larvais que não possuem asas. As glândulas alivares porduzem seda que é usada para fazer o casulo.
Os Lepidoptera são muito importantes para a polinização de diversas flores. Um estudo histórico analisou a coevolução deste grupo. Ao ver uma flor com tubo polínico muito longo, Charles Darwin supôs que existisse um Lepidoptera com uma probóscide muito longa, muito maior que o seu corpo, para que fosse compatível com o tamnho do tubo polínico apresentado, mas ele nunca achou esse animal. Pesquisas futuras instalaram câmeras para ver a flor durante a noite, e surpreendentemente ela foi visitada por uma mariposa com probóscide jamais vista, garnde o suficiente para adentrar naquele tubo polínico. Isto mostra um grande feito na evolução, uma previibilidade de causas e consequências no mundo natural sendo os fenômenos mais absurdos explicados pela relaçaõ entre espécies.
Na esfera da evolução, outro fator marcante em Lepidopteras é o mimetismo. Principalmente nas borboletas neotropicais, mimetisar outras borboletas é muito comum. A maioria das borboletas imita uma coloração específica de uma espécie venenosa para diminuir a predação. Outro mimetismo comum é associar caracterísiticas etológicas ou biológicas do outro indivíduo não deixando apenas na imagem, mas na ação de fato. Isto ilustrou um grande debate entre Bates (defensor da primeira ideia) e Muller (defensor da segunda) e a aprimoração destes fatos, ambos muito comuns em Lepidoptera ajudou muito a compreender certos fenômenos natuarais evolutivos.

Figura 4 - Borboleta polinizando um girassol, Lepidoptera
Hemynoptera
Quem já comeu mel, ou tomou uma mordida de uma formiga lembra deste grupo. Hymenoptera quer dizer asas membranosas por esse grupo possuir 4 asas membranosas sendo as anteriores são maiores que as posteriores. Embora alguns representantes modificados deste grupo como as formigas operárias perderão esta capacidade de voar. O grupo inclui vespas, abelhas, formigas entre outros.
Eles possuem, em geral, peças bucais mastigadoras, ma spodem também ser sugadoras como em abelhas. Sua nutrição é variada e muito importante em alguns casos como a polinização de flores pelas abelhas. A coevolução de plantas e insetos é muito marcante. Algumas flores tem atartivos como cores e aromas para atrair insetos sendo um dos mais usados os Hymenoptera. Devido a baixas populacionais das abelhas, muitos agricultores tem importado Hymenoptera do mundo todo para não cair a produção agrícola. A importância ecológica dos Hymenopteras não se restringe às abelhas. Algumas vespas parasitarias de aranhas são um dos principais responsáveis pelo controle populacional de alguns hábitats destes araquinídeos. As formigas também são muito importantes pois elas podem predar as folhas de palntas de forma devastadora e um formigueiro pode destruir muito uma área da plantação.
Eles são facilemente identificados por ter a divisão entre o tórax e o abdômen muito bem marcada por um pecíolo, tal qual as aranhas, e que permite uma flexibilidade do abdômen independente do tórax. No abdômen, o ovopositor se desenvolveu muito. Em muitas espécies e grupos ele se desenvolveu em um ferrão. O ferrão é uma estratégia de defesa impressioanante; quem já teve o desprazer de ser ferroado sabe o quão doloroso ele é. Um aguilhão que além de perfurante pode inocular veneno é uma vanatgem adaptativa preservada em Hymenoptera. É também conhecido o fato de que se uma abelha ferroa, o ovopositor está tão conectado ao corpo, que ela perde junto o abdôemen, morrendo por consequência.
Esse ato da abelha muitas vezes interpretado como sem sentido, uam morte por tão pouco, tem suas explicações num conceito evolutivo ainda mais arraigado em Hymenoptera, a Eussocialidade. Esta é uam característica que agrupa os indivíduos mais do que um bando organizado, mas dimorfismos aparente para diferentes funções tal qual céluals diferenciadas para diferentes órgãos de um mesmo corpo. Esta não é única aos Hymenoptera, surge também nos cupins (Isoptera). Ela faz com que os indivíduos sejam muito transformados visando a perpetuação da espécie como perpetuação da colônia. O ato da abelha é ilustrado por seu conteúdo genético, que ela quer repassar, estará preservado nos parentes dela que estarão seguros na colmeia se ela afastar o perigo em potencial. O conteúdo dela está "impregnado" nas outras que sobreviverão. Este conceito é feito por ter só uam reprodutora, a rainha, que gera todos os indivíduos, sendo todos eles muito próximos geneticamente e auxilaindo a preservação do bem comum.
Teorias upões que a Eussocialidade tenah surgido independentemente em alguns grupos de Hymenoptera como em abelhas e formigas. O sucesso evolutivo proporcionado pela eussocialidade foram vitais para a irradiação dos Hymenoptera tal qual a coevolução. As colônias podem abrigar diversos indíviduos bem modificados controlados por ferormônios e são muito beme struturadas e protegidas como uma colmeia e um formigueiro. No formigueiro a morfologia dos indivíduos se distiguem muito fazendo com que as operárias perdesem suas asas e muitas atuando apenas na defesa. Estudos etológicos apontam que as colônias são uma expressão evolutiva de preservação do material genético antes até que a preservação do próprio indivíduo e a estruturação desse sistema resultou em uma vantagem evolutiva suficiente para deixar Hymenoptera como um grupo muito comum e cosmopolita.

Figura 5 - Colmeia com abelhas, Hymenoptera
Diptera
Diptera é uma ordem extremamente diversificada, e se expandiu para todos os continentes. Considerada uma ordem mega diversa pois se encontra em quase todos os lugares do mundo, até na Antártida, e em muitas espécies. Sua forma larval habita os ambientes aquáticos e isso faz com que Diptera seja um dos grupos mais bem estruturados ao ambiente aquático em Hexapoda. O unico "impecilho" é o mar aberto, embora alguns habitem regiões costeiras e mangues. Ela corresponde aos mosquitos, moscas, mutucas e mosquitões.
A ordem é formada quase sempre por animais pequenos, de corpo geralmente mole. Possuem também cerdas nas fossetas antenais (vibrissas) sensíveis a vibrações como órgão sensorial auxiliar. Seus tarsos possuem 5 artículos.
Diptera significa duas asas. Essa é uma regressão muito específica e caracteriza os dípteros. As asas traseiras são muito reduzidas e transformadas em pequenas estruturas clavadas denominadas halteres, que funcionam como órgãos de equilíbrio. Isto dá aos Diptera uma capacidade de voo muito eficiente com a regulação de equilíbrio oferecido pelos halteres. É notável que moscas possuem rápidos reflexos e o seu voo consegue ser direcionado com manobras muito rápidas. Estas manobras só podem ser realizadas com uma velocidade considerável com o uso do ponto de equilíbrio dado constantemente a cada pulso pelos halteres. As outras duas asas, para compensar a falta do outro par, são bem desenvolvidas. Membranosas, estas asas conseguem sustentar o voo destes insetos.
Outro fator que faz de Diptera responsável por grandes reflexos é o sue campo visual. Seus olhos compostos são muito complexos e muito desenvolvidos. Olhos grandes em relação aos outros insetos e com muitos omatídeos caracterizam as regiões cefálicas de Diptera. O campoo visual fica estendido e ela pode visualizar um predador de diferentes ângulos e escapar com facilidade. Agilidade, reflexos rápidos, voo estabilizado e grande campo visual permitiram aos Diptera uma menor predação e garantiram sua irradiação pelo mundo.
Suas larvas são vermiformes, sempre associadas aos substratos úmidos. As fêmeas ovipositam as larvas em locais adequados dentro de substrato. A larva pode ou não possuir cabeça, mas nunca tem apêndices torácicos muito desenvolvidos. A oviposição pode ser realizada em diversos meios como águas paradas, matéria orgânica em decomposição, sobre vegetais, frutos e tecidos vivos do homem e dos animais. Carnes em decomposição são um ótimo substrato para moscas e elas atuam como ótimos detritívoras e ajudam muito a reciclagem de nutrientes. A presença de determinados ínstares larvais em carne putrefata foi amplamente usada na ciência forense e ainda é um método usado. Isto faz o papel ecológico importante da introdução destes grupos em ambientes aquáticos no seu ínstar larval conquistando ambientes tanto marinhos como dulçaquícola. É bem reconhecido que a fase larval de espécies conhecidas habitam a água doce, sendo sempre usual campnahs para não deixar água parada para evitar que o Aedes aegypti, mosquito que difunde o vírus da dengue, possa se reproduzir.
A lembrança da dengue nos faz relembarr que esses animais são vetores de doenças. Dengue, malária, leishimaniose, elefantíase, doença do sono, entre outras são doenças perigosas transmtidas. Sua alta fertilidade faz com que muitas dessas doenças fiquem fora de controle e se tornem problemas sérios. Isto associou muitos Diptera como "perigosos" ou "malignos", mas eles tem importância ecológica muito importante. São excelentes controladores biológicas na terra, ar e água. Podem até fazer a polinização de importantes flores e é essencial a algumas plantações. São considerados os Hexapoda mais importantes para o homem em termos ecológicos e médicos.
A capacidade de transmitir doenças vem principalmente da capacidade de alguns Diptera de perfurar em busca de sangue. A capacidade de hematofagia dos dípteros é muito interessante até porque esse padrão bucal não é unanimidade entre os Diptera sendo muitos deles com peças bucais sugadoras. A transmissão de doenças se dá pelo contato do vírus ou outro hospedeiro com o sangue da vítima através do canal gerado pela peça bucal hematofágica.