terça-feira, 9 de agosto de 2011

Diversidade de Cheliceriformes


Os Cheliceriformes são um filo muito comum e diverso. Eles terão seu Bauplan discutido em outro lugar, nesse texto discutiremos a diversidade dentro deste filo.

Esta é a filogenia usada neste site:


Mas isso não é também unanimidade. As filogenais são sempre revistas, rediscutidas e reformuladas. Uma desses garndes mudanças foi a criaçaõ do grupo merostomata, tirando Eurypterida de Arachnida (próximos aos atuais escorpiões) e colocando próximo a Xyphosura.


Pycnogonida


Os Cheliceriformes eram normalmente associados ao nome Chelicerata. Mas um representante deste filo, os Pycnogonida, não são deste grupo Chelicerata, mas são próximos, sendo assim incluído o grupo dos Cheliceriformes. Os Pycnognida são todos marinhos e são conhecidos como aranhas-do-mar. São bem difundidos e habitam do trópico aos pólos.

Eles principalmente diferem dos outros Cheliceriformes por não possuir opistossoma. Eles por isso são muito reduzidos normalmente embora possam chegar a tamanhos consideráveis em umas espécies. Eles possuem dois pares de ocelos medianos. Houve uma redução nos olhos laterais compostos. Alguns fósseis do Devoniano apresentam abdômen segmentado e é possível ver um vestígio abdominal.

Eles possuem uma probóscide tubular que se projeta do céfalo e possuem uma boca na extremidade distal, que chega a alcançar metade do comprimento do corpo. Os Pycnogonida, por pertencer aos Cheliceriformes, apresentam quelíceras e possuem também pedipalpos. As quelíceras manipulam o alimento, e os palpos são sensoriais. Eles apresentam pernas ovígeras que servem para transportar e fixar a massa de ovos. Estas pernas ovígeras são predominantes em machos, pois eles carregam os ovos depois das fêmeas depositarem. Além disso, podem servir pra autolimpeza. Elas possuem múltiplos gonóporos. Sua fertilização é externa.

Seus apêndices possuem 9 ou 8 artículos que podem se alongar muito. Em geral, os Pycnogonida são carnívoros e se alimentam de animais como hidróides. A probóscide é introduzida na presa para sugar seus tecidos. O animal provavelmente mastiga e filtra pela sua faringe. As glândulas de cimento nos fêmures dos machos seguram uma massa de até 1000 ovos esfericamente. Algumas espécies podem ter aberrações de possuir mais pares de pernas, existindo Pycnogonida de 5 e até 6 pares de pernas.

Figura 1 - Ammothea hilgendorfi, Pcynogonida encontarda na Califórnia


Arachinida


Os Cheliceriformes eram muito mais conhecidos por Chelicerata. Este grupo, também chamado de Eucheliceriformes apresenta Aracnida como grupo-irmão de Merostomata.

Arachnida represnta muito a diversidade dos Cheliceriformes. São, depois de Atelocerata, o grupo mais diverso em Arthropoda. Normalmente associam este grupo à aranhas, mas há vários outros grupos como escorpiões, opiliões e ácaros, que são bem abundantes também. Seu hábitat é predomiannte terrestre, sendo assim, bem adaptados a esse terreno. Essa conquista, independente dos Unirramia à terra firme, foi muito útil para a grande diversidade desse grupo sendo a irradiação evolutiva dos aracnídeos dependente da vida terrestre. Diferente de Xyphosura, os aracnídeos adiquiriram medidas para sobreviver a esse novo e mais hostil hábitat. As medidas variam de intensificar a respiração sem brânquias até a conservação da água. Uma epicutícula cerosa diminui a transpiração e garantiu que eles alcançassem ambientes hostis como desertos.

A respiração se mostrou efetiva pelo surgimento de pulmões foliáceos, uma mudança das brânquais foliáceas. Também surgem traqueias ligando esse sistema respiratório, e ele não é homólogo às traqueias de Tracheata. A excreção se dá por ácido úrico de Túbulos de Malpighi, talvez também não homólogos aos outros, outra adaptação à vida terrestre. Os apêndices também se mostraram muito úteis para se locomover em terra firme. É também de se denotar que caracerísticas muito específicas e úteis na sobrevivência surgiram independentemente em vários grupos como a pordução de seda para teias e venenos.

Seu tagma é dividido em prossoma e um opistossoma. O opistossoma possuem 12 segemntos. Surgem também pedipalpos e quelíceras. As quelíceras queladas são usadas para alimentação e defesa. Em alguns grupos possuem veneno ou fazem teia. O pedipalpo varia muito e pode ser raptorial, locomotora, sensorial ou reprodutiva. Os apêndices locomotores possuem gnatobases. A divisão entre prossoma e opistossoma pode ser vestigial ou bem pronunciado em um pecíolo. A maioria é carnívora e sua alimentação se dá com as enzimas gástricas extrapolando-se e digerindo externamente, já que o trato digestivo só digere líquidos. A excreção é ajudada por glândulas coxais herdadas de ancestrais aquáticos.

Em Cheliceriformes é notada a uma ausência de um deutocérebro, porém, isso não influencia a extrema capacidade sensorial obtida em Arachnida. Uma dessas capacidades é a função do tricobótrio. Ele é constituido de cerdas muito sensíveis ligadas à movimentação do ar e permite identificar presas mesmo sem visão. Visão esta muito favorecida pela diversidade de olhos deste grupo, permitindo um alcance visual com uma grande amplitude. Eles possuem olhos simples, compostos, medianos e laterais.

Dentro deste grupo há muitas ordens famosas e bem diversificadas.


Scorpiones


A figura dos escorpiões é muito associado ao perigo. Sempre alertados sobre o veneno letal, muitas pessoas aprenderam a temê-los, mas não conhecê-los. Entretanto, apenas 25 espécies são letais ao homem, mas quando são porduzem muitas mortes e rapidamente. A principal caracterísitica que distingue o grupo é o seu aguilhão venenoso no seu abdômen. Muitos os ligavam aos Eurypterida, os escorpiões-do-mar, extintos, porém, as novas filogenias o não comprovam mais. Entretanto, eles possuem semelhanças morfológicas que não forma mais vistas nos outros quelicerados, o que ainda gera discussões sobre a filogenia do grupo.

Uma dessas característcas é um abdômen dividido em mesossoma e metassoma. O mesossoma é praticamente fundido ao prossoma e o metassoma é fino, multissegmentado e alongado. No seu extremo há um aguilhão que contém veneno. Os apêndices ficam no opistossoma, alguns destes - os pedipalpos - são bem característicos. Eles são bem visíveis, grandes e quelados. Os escorpiões o usam para manipular os alimentos, capturar e fixar inimigos ou na fecundação. Em contraste a estes pedipalpos estão as quelíceras, que em Scorpiones são muito reduzidas, embora também sejam queladas. Os escorpiões são, em sua maioria, noturnos e usam por exemplo, pentes sensoriais dispostos na região ventral para a sensibilidade.

Os escorpiões são um belo exemplo da conquista do ambiente terrestre dos quelicerados. Sua resistência à perda de água garantiu com que estes dominassem e se difundissem em ambientes muito hostis ocmo desertos, sendo ali o ápice da diversidade da ordem. O hábitat desértico não lembra nada o ancestral comum de Chelicerata, que era marinho. Na adaptação, surgiram pulmões foliáceos que se abrem em espiráculos. O hábito noturno é essencial para essa adaptação, pois ao fugir do sol forte, se evita um cuidado excessivo contra a perda de água e isso foi essencial à conquista de ambientes desérticos.

Eles são predadores exemplares; identificam a presa pela visão, ou tricobótrios, ou os pentes ou os pedipalpos sensíveis. Suas quelíceras e gantobases dilaceram a presa. A taxa metabólica dos escorpiões é muito baixa, o que permite-o sobreviver por muito tempo sem comida, além de não precisar beber água. A fecundação é interna, e a corte do escorpião é complexa. É notável o cuidado parental da fêmea aos recém-nascidos. Isto talvez seja associado ao fato do escorpião, diferentemente dos outros artrópodes, ser vivíparo.


Figura 2 - Escorpião habitante de deserto.


Pseudoscorpiones


Pseudoescorpiões são animais bem comuns, embora não observados por serem pequenos. Eles são achados quando observa-se a serrapilheira com mais detalhamento. Externamente eles são muito similares aos escorpiões, mas apresentam várias diferenças, o que dá o nome ao grupo de “falsos” escorpiões. O corpo pequeno permite que eles passem despercebidos de predadores e até possuirem foresia, uma capacidade interessante que permite ao animal se prender às pernas de insetos maiores com seus pedipalpos e voar com eles de carona.

A principal diferença entre eles e os escorpiões é que seu opistossoma não é dividido em metassoma e prossoma. Logo, não possuem uma parte do abdômen fina e bem separada, o que é a principal característica do escorpião. Eles também não alcançam o tamanho comum dos escorpiões, que são grandes, e se restringem a tamanhos menores. Em verdade, o que fez este grupo ser denominado escorpiões foi a presença de pedipalpos muito pronunciados. Esses proeminentes palpos tem referencial em escorpiões, sendo muito similares externamente ao que deu a aparência de escorpiões a eles. Entretanto trata-se de uma aparência apenas exterior, pois os tipos de palpos são muito diversos. A principal divergência entre os pedipalpos é que em Pseudoscorpiones eles são venenosos, tendo o papel que era atribuído ao aguilhão venenoso do escorpião no seu abdômen.

Esta é uma ordem que exemplifica bem que a evolução não segue a mesma linha, não segue uma lógica. O veneno, que é uma característica presente em Cheliceriformes, surge em pelo menos 3 órgãos bem distintos. Ou seja, se um animal possui veneno em uma parte do corpo, não necessariamente todos do mesmo grupo deverão possuir veneno na mesma parte, mesmo que eles sejam visualmente muito parecidos. Outra prova disso, analisando Pseudoscorpiones, é que esses animais produzem teia. Contudo, eles não produzem em fiandeiras no tronco como as aranhas, mas sim nas suas quelíceras queladas. Isto mostra outra expressão marcante de Arachnida em lugares diferentes como veneno e teia, talvez assim provando sua não homologia dentro dos aracnídeos.


Figura 3 - Pseudoescorpião mexicano


Opiliones


Opiliões são aracnídeos peculiares com grande abrangência de distribuição. Eles são conhecidos em alguns países como harvestman (colhedor) por ter uma explosão populacional todo outono, coincidente com a época da colheita e por alguns táxons terem pedipalpos raptoriais em forma de foice. Muitas culturas associaram lendas da fertilidade da colheita aos opiliões.

Sua característica fundamental são suas pernas muito alongadas e peculiares. Muitos os associavam a algumas aranhas venenosas com pernas longas, mas eles são bem diferentes. E a principal diferença entre é que opiliões não tem uma divisão aparente entre prossoma e opistossoma. Eles são unidos e recobertos com uma carapaça dando a eles uma forma oval. Junto com seus apêndices muito longos em relação ao corpo, é comum associar a imagem aos opiliões.

Eles são aracnídeos que não compartilham muitas estratégias adquiridas pelos outros aracnídeos independentemente, como a produção de seda ou toxinas. (Isto também é um indício da não linearidade da evolução pois não só porque ele é um aracnídeo ele tem que desenvolver essas estratégias, mesmo que os outros do seu grupo tenham desenvolvido independentemente). Estas ausências, similares ao plano estrutural, foram também responsáveis para se repensar na não homologia entre essas peculiaridades de diverentes aracnídeos.

Seus apêndices muito longos são muito úteis por ao andar sobre a serrapilheira, com terrenos diversos e irregulares, essas longas pernas são capazes de dar ao animal mais estabilidade na locomoção. Isto atribui ao animal uma forma melhor para locomover-se em terrenos muito desiguais, dando a eles mais rapidez - quando necessário - e gerando uma vantagem evolutiva. Seu tamanho se dá por um traso multissegmentado, possuidor de centenas de artículos. Eles usam esse tarso em forma de chicote até para se enrolar em caules e permitir que escalem mais facilmente. Seus apêndices são usados também com funções sensoriais, principalemnte o segundo par de pernas, que funcionam como antenas, sendo muito mais longos e se pondo para a frente com funções táctil e sensorial. Algumas máquinas que têm que se moviementar em terrenos muito irregulares adotam um padrão físico semelhante aos opiliões. A NASA, por exemplo, já estudou a forma de locomoçaõ de opiliões para adaptar aos robôs que vão a planetas ou satélites com terreno muito irregular.

A autotomia (perda voluntária) de apêndices é uma estratégia observével em opiliões para a defesa, mas não apresentam regeneração. Para a defesa se observa também a presença de glândulas repugnatórias com um odor amargo. Eles não mordem, mas são capazes de ingerir partículas sólidas pela ausência de uma faringe filtradora. Eles, tal qual os ácaros, apresentam um pênis distinto para fecundação direta que acontece sem corte elaborada e é depositado na fecundaçaõ nas quelíceras da fêmea. É notável em alguns opiliões o cuidado parental excessivo, levando em casos até a morte dos pais. Como também contestador de linearidade evolutiva, novos estudops apontam que as traqueias de Opiliones pode não ser homóloga às outras traqueias de Arachnida, sendo assim, mas uma convergência inetressante dos aracnídeos.


Figura 4 - Opilião tropical


Acari


Acari representa muitos araquinídeos viventes, mas sua diversidade é muito subestimada. Os Acari, por seu tamanho geralmente muito reduzido, muitas vezes se passam desapercebidos. Muitos ectoparasitas específicos de certas espécies passam muito tempo sem sequer serem notados. E alguns deles, muito modificados, habitam na nossa pele (os “cravos”). Sua diversidade estimada é muito menor do que a catalogada até na mais conservadora das hipóteses. Eles também são um importante fator do “plâncton aéreo”, pequenos aniamis que são levados pelo vento e estão no ar que respiramos. Isto os deixa com ampla distribuição. Muitos ácaros são cosmopolitas.

O estudo deles é muito útil ao homem pois muitos são parasitas nossos, de animais domésticos, de plantas. Alguns são vetores de doenças letais como o carrapato-estrela, e o vetor do tifo, ou são grandes porblemas de sáude como as sarnas. Pesquisas apontam surtos de doenças pulmonares como bronquite com a superpopulação de ácaros em roupas de cama e travesseiros.

Seu corpo também é facilmente reconhecido pois não há uma segmentação igual aos outros Arachnida. Eles possuem um prossoma que é a fusão do prossoma com o opistossoma e um gnatossoma que é a região das quelíceras e dos pedipalpos. A parte do gnatossoma é a responsável pela alimentação, os apêndices cefálicos proeminentes.

Pequenos, podem habitar lugares tão pequenas cmo a glândula sebácea do homem até razoalvelemnte grandes como carrapatos. Há a presença de cerdas sensoriais pelo corpo. Eles também são os Arachnida com mais diversidade aquática, tanto marinha como dulcícola. Diferentes gnatossomas aparecem para diferentes dietas.


Figura 5 - Carrapato-estrela fêmea, Amblyomma americanum


Araneae


Em Cheliceriformes, o grupo mais lembrado com certeza é Araneae. Os indivíduos deste grupo são muito comuns e facilmente vistos em qualquer lugar do mundo (exceto a Antártida). Muitos temem as aranhas por algumas serem letais ao homem, e as suas teias peculiares são facilmente reconhecidas. A formação de seda bem estruturada é a principal característica que permitiu a grande diversidade das aranhas.

A formação de teia está para a radiação das aranhas como o vôo está para a dos insetos. Aliás, um dos grandes fatores do sucesso da teia é o voo dos insetos. Com os insetos alçando vôo, eles escapam de muitos predadores. A teia conseguia fazer algo inovador, capturar os insetos nesse novo hábitat, os céus, até então protegidos. As teias dão às aranhas, que são praticamente todas carnívoras, a capacidade de se alimentar de muitos animas que estavam imunes aos outros predadores. As teias são confeccionadas de forma padronizada e até é usada para a diferenciação de espécies. Elas seguem um mesmo padrão de construção mas podem divergir de agordo coma função,a presa em potencial e até a portadora. Nem todas as aranhas tecem teias de armadilha como as cursórias (Tarântula). Elas usam outros métodos de captura como o uso da força, veneno, rapidez e até cerdas urticantes para a defesa.

Mas não só de armadilhas raptoriais servem as teias das aranhas. Elas são usadas para diversas funções vitais como reprodução, pois, além de fazer seus ninhos, os ovos são dispostos em um ovissaco protegido; provavelemnte essa era a função primordial dela. Elas são usadas para auxiliar a movimentação das aranhas vencendo obstáculos como distâncias entre árvores e até é observado o transporte de aranhas pelo vento usando a teia como auxiliadora; essa técnica chamada de balonismo é muito usado por filhotes. Isto favoreceu muito a dispersão das aranhas e corroborou para a grande irradiação deste grupo. Estas teias são produzidas por glândulas específicas localizadas no abdômen denominadas fiandeiras. A seda é uma mistura de glicina, alanina e serina e dá a ela mais resistência do que o náilon, só que de forma mais elástica. Outra função é o fio-guia que permite que aranhas impulsionem seu quarto par de apêndices locomotores e pulem grandes distâncias para capturar presas e ficarem seguras e suspensas por um fio que funciona como um “bungee jump”. Devemos lembrar que a produção de seda não é exclusividade das aranhas e nem sequer é única entre os Cheliceriformes.

As aranhas são reconhecidas por ter a divisão entre o prossoma e o opistossoma muito bem marcado por um pecíolo muito constritor. Isto permite que o opistossoma se movimente de forma independente do prossoma. Este é caracterizado pela ausência de uma segmentação externa aparente e ser recoberto por uma carapaça. No prossoma, as aranhas possuem quelíceras bem desenvolvidas.

As quelíceras em Araneae são muito mais desenvolvidas que em outros grupos de Cheliceriformes e elas contém veneno. O veneno não é exclusivo das aranhas, mas a presença dele sendo injetado em quelíceras é. Muitos desses venenos são apenas substâncias químicas digestivas que auxiliam a digestão externa dos tecidos pois o trato digestivo das aranhas não aceita partículas sólidas. Mas alguns venenos são neurotóxicos e podem causar grandes danos. Elas podem ser paraxiais (se movimentando horizontalmente) ou paralelodontes (se movimentando verticalmente).

As aranhas também possuem pedipalpos sensoriais. Eles são muito úteis, pois algumas aranhas não posssuem boa visão ou são ativas a noite e esses pedipalpos sensoriais são muito efetivos para detectar vibrações na teia formada por presas. Os pedipalpos são usados para a transferência indireta de espermatozóide às fêmeas. É conhecido hábitos de reproduçaõ de aranhas peculaires. Um caso é a viúva negra, que mata e ingere o macho após a cópula, ou de aranhas que se entregam aos filhotes como primeiro alimento, se sacrificando para a sobrevivência da espécie. Elas possuem opérculos genitais com cortes bem definidos.

É também marcante a presença de oito olhos (podem haver regressões). O campo de visão obtido com esses 8 olhos dispostos separadamente alcançam uma amplitude muito grande. Isto auxilia muito o hábito predatório e até a defesa. Se observa também claramente a presença dos pulmões foliáceos. Eles são responsáveis pela conquista do ambiente terrestre em Cheliceriformes e se mostram bem dispostos em Araneae e são visualmente distintas as traqueias de aranhas abertas em um único espiráculo, não homólogo aos de insetos (e talvez até de outros quelicerados).


Figura 6 - Vívua-negra em sua teia

Há também alguns grupos menores em Arachnida. Sua distribuição não é muito ampla nem comum, mas são essenciais para se estudar a filogenia de Cheliceriformes de forma completa. Um desses é Uropygi, que são Cheliceriformes que projetam substâncias repugnatórias quimicamente similares ao vinagre usual (aquele que ingerimos). Há também Amblypygi próximo às aranhas mas com pedipalpos raptoriais desenvolvidos. Também existem os Palpigradi que apresentam muitas reduções para viver em ambientes intersticais. Existem também Solifugae, com quelíceras muito desenvolvidas e grande velocidade, e Ricinulei com pedipalpos queldos habitando cavernas.

Figura 7 - Escorpião-Vinagre, Uropygi


Xyphosura


Como grupo-irmão de Aranea, existem os Merostomata. Eles incluem os Xyphosura e os Eurypterida. São caracterizados por possuírem um télson muito alongado e brânquias características.

OS Xyphosura são os maiores Cheliceriformes vivos, alcançando até 75 centímetros e são mais conhecidos como Caranguejos-Ferradura, embora não seja crustáceo, ou Límulos. O hábitat deles é marinho, e isso faz com que o estudo filogenético dele seja essencial para entender como se deu a filogenia dos Cheliceriata em geral. Eles estão presentes no registro fóssil desde o Siluriano e apresentam grande importância em faunas pretéritas, mas hoje seu número é bem reduzido quando comparado ao registro paleontológico.

Embora possuam hábito marinho, é observado em Xyphosura um caráter de vida anfíbia. Eles conseguem, em certos momentos da vida, se deslocar por sobre a terra firme e desovar na praia. Esta ida à terra firme não levou à grandes mudanças (explicado pela evolução não linear e obrigatória) e eles sofrem diversas deficiências. Embora não seja uma vida anfíbia totalemnte adaptável, é considerado sim, um dos principais animais a ser estudado para analisar a conquista do ambiente terrestre. Novas teorias indicam que a conquista do ambiente terrestre nos artrópodes se deu de forma muito similar ao observado em Xyphosura, a desova em fases da vida para evitar predação do hostil ambiente marinho. Embora a fecundação seja externa, diferentemente da maioria dos artrópodes. A conquista do ambiente terrestre se deu várias vezes e uma delas, a dos Xyphosuras devem ser observadas com muita atenção por proeservar caracterísiticas similares a teorias do inicio de outras. A respiração que faz o animal sobreviver em terra firme depende em parte das brânquais foliáceas presentes numa câmara branquial que se especializaram, de certa forma, a suportar um pouco a fuga da água. Estas brânquias foliáceas juntas possuem até 2 m² de superfície para trocas gasosas.

Eles apresentam uma carapaça muito evidente. Associam a sua forma ao modo de se enfiar no sendimento e à proteção. Outra característica que evidencia à proteção, além da desova em terra firme, é a alta quantidade de toxinas em seus tecidos. Ela recobre um opistossoma e um abdômen que são bem separados. Suas quelíceras são queladas tal qual os apêndices locomotores, menos o sexto. Apresentam também um longo espinho caudal na parte posterior do abdômen como também portam espinhos laterais no opistossoma. Os segmentos pré-abdominais são fundidos. Seu estômago consegue tratar alimentos sólidos. Alinha ventral forma um canal sobre o qual o alimento triturado chega à boca. O alimento é triturado por gnatobases em apêndices locomotores da mesma forma que em Trilobitomorpha. As relações com Trilobitomorphas são evidentes. A larva que emerge do ovo é denominada larva trilobita, tamanha semelhança morfológica.

Seu celoma é vestigial, e a cavidade do corpo presente é a hemocele. Seu sangue contém hemocianina presente e é por isso muito usado para estudos fisiológicos sobre o funcionamento do sangue. Ele é muito usado em estudos fisiológicas também, pois seus olhos compostos são muito simples e provavelmente não formam imagem, mas apenas detectam movimento, e são usados em estudos sobre as relações neurais da resposta aos omatídeos.


Figura 8 - Caranguejos-ferradura habitando o litoral da Califórnia


Eurypterida


Os Eurypterida são um grupo muito surpreendente. Alguns fósseis estimam que eles possam ser (algumas espécies) os maiores artrópodes que já existiu tomando o comprimento de até 3 metros. Eles são considerados os Escorpiões-do-mar e sumiram no registro fóssil indicando que eles viveram do Ordoviciano até o Permiano, padecendo na grande extinção em massa que antecedeu o Triássico.

Como carcterística marcante, seu opistossoma é dividido em mesossoma e metassoma como os escorpiões atuais, o que deu nome ao grupo. A ligação com os atuais escorpiões é defendida por algumas pessoas, mas as filogenais atuais negam essa ligação fazendo essa divisão do opistossoma convergência. Seu cefalotórax é menor do que o abdômen geralmente.

Eles possuem apêndices natatórios auxiliares que auxiliavam seu transporte no meio marinho, embora hajam suspeitas de que esses animais tinham uma vida anfíbia tal qual os Xyphosura. Apêndices modificados poderiam auxiliar que esses animais se arrastassem até a praia e desovassem. Eles apresentavam quelíceras também. Os segmentos abdominais não são fundidos e é marcante o pré-abdômen com 7 segmentos e um pós-abdômen com 5.

Eles possuem 5 pares de brânquias foliáceas, mas não tem opérculo genital. Há teorias que o espinho caudal do pós-abdômen tenha sido venenoso tal qual os modernos escorpiões. Alguns deles são descobertos em assembléias de fósseis o que pode indicar uam vida social ou em conjunto, tal fato já discutido em Trilobitomorpha.


Figura 9 - Fóssil de Eurypterida conservado


Figura 1 - http://nathistoc.bio.uci.edu/Pycnogonida/Ammothea.htm

Figura 2 - http://amandoanimais.blogspot.com/2010/12/escorpiao.html

Figura 3 - http://www.arachnologyatjunction.com/10.html

Figura 4 - http://ecologia.ib.usp.br/opilio/fotos/harvestmen/foto035.html

Figura 5 - Dr. Amanda Loftis, Dr. William Nicholson, Dr. Will Reeves, Dr. Chris Paddock

http://www.osasco.sp.gov.br/ccz/fauna-carrapatos.html

Figura 6 - http://www.sempreantenados.com/animais/viuva-negra

Figura 7- http://aboutgecko.com/aboutgecko/whip-scorpion-or-theliphonyda/

Figura 8 - http://scienceblogs.com.br/bessa/2011/01/a_caranguejo_ferradura_adltera.php

Figura 9 - http://commons.wikimedia.org/wiki/File:Mixopterus_kiaeri.JPG


Diversidade de Hexapoda

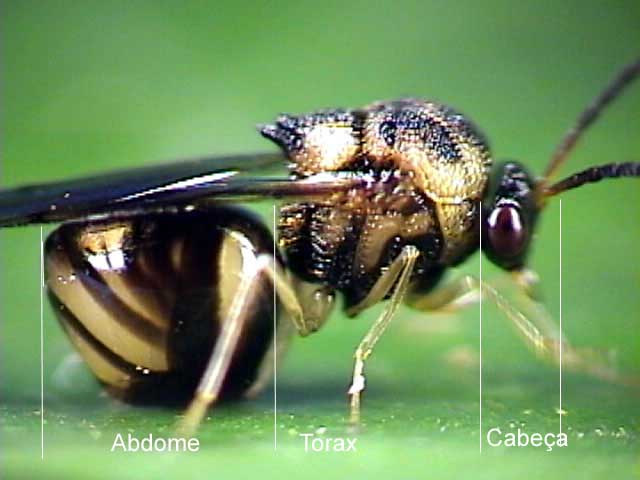
Os Hexapoda tem esqema corporal dividio em três tagmas: cabeça ou cephalon, tórax e abdomêm. A cabeça possuí cinco segmentos pós ácron, um par de antenas no primeiro segmento, mandibula no terceiro segmento e duas maxilas nos quarto e quinto segmentos. O terceiro segmento da cabeça nos hexapoda possuí uma estrutura interna que pode ser também derivada do apêndice ancestral chamada hipofaringe ou super-lingua.

A hipofaringe é uma sinapomorfia de Hexapoda mais Myriapoda, grupo que recebe os nomes de Uniramia, Tracheata ou Artelocerata. Como o próprio nome já diz tanto Myriapoda quando Hexapoda possuem estruturas respiratórias chamadas traqueas, que nada mais são que tubos respiratórios que se abrem em orifícios chamados espiráculos e levam o ar diretamente aos orgãos. Embora as traqueas de Myriapoda e Hexapoda sejam provavelmente homólogas há também a presença de estruturas semelhantes, não homólogas, que recebem o mesmo nome em alguns Cheliceriromorpha, de modo que este não é o melhor nome para o grupo por se tratar de uma estrutura convergente.

Como também nos informa o nome do grupo mais inclusivo, Uniramia, os Hexapoda possuem apêndices uni-remes, ou seja, com um único ramo. Isso é verdade para o primeiro par de apêndices locomotores e para as antenas, contudo a certa discussão acerca da origem das asas como provável exito da epicoxa dos segundo e terceiro pares de apêndices locomotores dos Pyterigota. Uma discussão sobre a adequação da nomenclatura Uniramia será melhor discutida aqui.

Os Hexapoda podem ser didáticamente divididos de acordo com seu metabolismo em três grandes grupos: os Ametábula, os Hemimetábula e os Holometábula, dos quais apenas o último é monofilético. Grande parte da variedade de Arthropoda reside neste grupo e dentro de Holometábula por razões que serão discutidas mais adiante. Abordaremos dentro de Hexapoda os “Entognata”, os Paleoptera e as ordens mega diversas de Holometábula ou Endopterygota (dentro de Neoptera).

Figura A - Hexapoda, onde pode-se ver as 6 pernas e o tagma divido em 3, Neuroptera


“Entognata”


São ametábulos e portanto ápteros (não possuem asas). Podem ser facilmente diferenciados de insetos verdadeiros através de seus apêndices locomotores que terminam em uma única garra, enquanto que os Insecta possuem ao menos duas garras terminais. Possuem peças bucais mastigadoras e internas, caracteristica que dá nome ao grupo.

“Entognata” é um grupo parafilético dividido em Diplura e Parainsecta, sendo o último grupo dividido em Protura e Collembola. Parainsecta pode ou não ser um grupo monofilético.

Diplura são pequenos e possuem dois cercos, estruturas que dão o nome ao grupo. Não são pigmentados e não possuem estruturas sensoriais relacionadas a visão. Podemos nos perguntar se estas caracteristicas são semelhantes ao do plano básico de Hexapoda ou se são, na verdade, reduções, sendo que a segunda hipótese é mais parciomoniosa dada a existencia de olhos em todos os outros grupos de Arthropoda. Também possuem vesículas eversíveis no abdômem, provavelmente relacionadas com regulação osmótica.

Protura, como Dipluras, não possuem olhos, mas são marcados adicionalmente pela redução das antenas. O primeiro par de pernas é modificado e toma a função sensorial que corresponderia as antenas, ficando sempre em frente ao restante do corpo. São também pequenos, da ordem de milimetros, e vivem principalmente em micro-habitats úmidos.

Collembola são popularmente conhecidos como springtails (“cauda de mola”) por conta de uma estrutura chamada fúrcula que se dobra por sob o abdome e se desdobra rapidamente proporcionando um salto usado para escapar de predadores. Tem um abdome reduzido, com apenas seis segmentos, oq ue pode facilitar a sua distinção dos insetos verdadeiros. São predadores de insetos verdadeiros, de outros Collembola e também de pequenos Myriapoda. São os Hexapoda de registro fóssil mais antigo datando do Devoniano.

Figura 1 - Collembola, vista dorsal


Paleoptera


Como o nome sugere são os insetos pterigotos (portadores de asas) mais antigos. Suas larvas são exclusivamente aquáticas e possuem desenvolvimento hemimetábulo, mas não são os únicos a apresentá-lo, caso no qual Hemimetábula poderia ser considerado monofilético. De fato há varios grupos de Neoptera que são também hemimetábulos, isto é possuem o desenvolvimento das asas acompanhando sua maturação sexual, como por exemplo Blatodea e Hemiptera.

Ao contrário dos Neoptera estes insetos não são capazes de dobrar suas asas por sobre o abdome, o que sugere que as asas de Paleoptera podem ter surgido de maneira independente. Também podemos aceitar um ancestral comum de Paleoptera e Neoptera com asas mais semelhantes ao primeiro que tardiamente ganham as articulações necessárias ao dobramento. Em ambos os casos as asas dos dois grupos são homólogas se aceitarmos a origem branquial delas (veja mais aqui). O monofiletismo do grupo é aceito, embora controverso. Há hipóteses que o consideram parafilético com Ephemeroptera ou Odonata com um ancestral comum compartilhado mais próximo em relação aos Neoptera.

Os Odonata são comumente chamados de libélulas. São predadores carnivoros em seus dois estágios de desenvolvimento. A larva possuí uma estrutura labial extensível para a captura de presas e se alimenta de pequenos peixes. Os adultos tem voo rápido e são extremamente territorialistas. Seu abdome é alongado e flexível, podendo dobrar-se durante a cópula. Suas asas permanecem sempre perpendiculares ao corpo.

Ephemeroptera recebem este nome dada sua fase adulta de vida extremamente curta, durante a qual os imagos sequer se alimentam. Em sua maioria possuem filamentos abdominais mais ou menos longos, e as ninfas apresentam brânquias traqueais. São os únicos insetos com asas a ter mais de um estágio adulto.

Figura 2 - Odonata


Holometabula


Única forma de metabolismo que é sinapomorfia caracteristica de um grupo monofilético, o holometabolismo é a alteração completa do padrão corporal do jovem para o adulto. O adulto é chamado Imago como nos outros grupos e possuí asas completamente formadas. Os jovens são chamados larvas, geralmente animais vermiformes e cilíndricos de corpo mole, e passam por um estágio de pupa em que sofrem de maneira pontual todas as mudanças que os transformam em adultos. Dada a formação das asas no interior de um invólucro o grupo é também chamado Endopterygota.

Grande parte da diversidade dos Arthropoda (e da vida na Terra) está neste grupo de insetos. Isso pode ser explicado primeiramente pela presença de asas nos Pterygota, que permitem maior dispersão e constituem vantagem evolutiva na busca por alimentos. A própria dispersão proporcionada pelas asas favorece eventos de segregação gênica e especiação devido a diferentes pressões seletivas. Os Holometábula são particularmente mais diversos dentro dos Pterygota dada a metamorfose que sofrem. Por conta da larva e do imago ocuparem nichos ecológicos completamente diversos eles raramente competem por alimento, permitindo que uma geração jovem chegue ao estágio de imago sem sofrer pressões por conta da população adulta.

Aqui trataremos as quatro ordens mega-diversas de insetos: Coleoptera, Lepdoptera, Hemynoptera e Diptera. Mas é óbvio que existem muito mais ordens de Holometabula.

Figura B - Casulo de Lepidoptera

Coleoptera


É o grupo que engloba todos os bezouros e a maior das ordens mega-diversas contituindo 40% da diversidade no planeta Terra.

O primeiro par de asas dos Coleoptera é modificado em élitros rigídos que protegem o segundo par de asas, estas membranosas e úteis ao voo. Os élitros são uma ferramenta importante na identificação das famílias de Coleoptera, na maioria das familias eles sobrem todos os segmentos abdominais ou deixam de fora apenas o pigídeo. O número de segmentos deixados descobertos pelo élitro é caracter diagnóstico de muitas familias onde a cobertura completa não se verifica. A coloração dos élitros também são caracteres diagnósticos.

A tagmose de Coleoptera geralmente sofre uma peculiaridade, com o protórax (primeiro segmento do tórax) mais pronunciado, e o mesotórax e metatórax (segundo e terceiro segmentos no tórax) normalmente fundidos e recobertos pelos élitros.

Eles possuem cabeças arredondadas, ou podem apresentar cabeças alongadas em um rostro. Em ambos os casos as peças bucais são mastigadoras, mas podem ser afiadas e delgadas conjugadas com um sulco pelo qual o besouro suga liquidos corporais das presas ou linfa dos vegetais. Há espécies herbivoras de interesse comercial por atacarem grãos, e também espécies carnívoras que predam outros insetos e pragas (ao exemplo das joaninhas). Alguns também podem ser necrófagos, como os famigerados escaravelhos. Há uma articulação membranosa entre a cabeça e o tórax presente em todos os bezouros que forma uma espécie de ‘pescoço’. Os olhos compostos estão na lateral da cabeça e as antenas são de tamanho e número de articulos variados, constituindo outro importante caráter identificador.

As larvas são vermiformes e geralmente brancas, não possuem apêndices locomotores ou já possuem três apêndices locomotores. Geralmente há ocelos presentes nas larvas, caracteristica que se mantém em poucos adultos. Possuem habitats bem variados, as vezes aquáticos ou semi-aquáticos, alguns subterrâneos e outros vivem em associação com ninhos de insetos sociais.

Figura 3 - Escaravelho-veado, Coleoptera


Lepidoptera


As borboletas e mariposas sempre encantarama humanidade ao longo dos tempos. Seu colorido, sua associação com as flores e seu modo de voo, são atarentes e agradáveis. Sua metamorfose, embora seja algo comum aos Holometabula, é muito associado aos Lepidopteras. A lagarta virando um casulo e virando um indivíduo alado, embora se deem em muitos insetos, são quase sempre associado aos lepidópteros. Talvez por suas lagartas serem vistosas e gerarem problemas na agricultura, seu casulo ser fácil de se localizar e pela saída dele de um indivíduo com asas muito desenvolvidas e muito diferente da forma larval.

Mas sua principal característica, única oas Lepidoptera, é a presença de uma probóscide enrolada. Neste grupo as duas maxilas se alongam e se unem em um tubo enrolado que serve para sugar néctar, a espirotromba. Ela pode se expandir consideravelmente explicado pela sua forma enrolada funcionando com o briquedo "língua-de-sogra". Não estão presentes mandíbulas.

A outra principal característica do grupo é a presença de escamas. O nome Lepidoptera vem desse caracter, pois ele significa asas com escamas. Pode-se observar a presença delas quando se passa amão sobre uma asa de borboleta ou mariposa e fica na sua mão um pó fino. Elas são células hipodérmicas acahatadas que podem estar muito abundantes numa asa. A difração da luz por estas células causa cores muito vivas e peculiares, chamadas de cores estruturais, e estas dão mais beleza ao voo de um Lepidoptera. Mas eles são capazes de porduzirem pigmento colorante no corpo fazendo as cores pigmentares. A fusão dessas cores associado ao movimento da asa faz com que este grupo seja visualmente bem característico e produza fenômenos luminescentes bastante claros.

Eles em geral apresentam corpo mole associado mais a uma continução do polano estrutural das lagartas. Isto facilita muito o voo. O voo alias é uma excelente vantagem usada amplamente pelas borboletas e mariposas. Seu corpo relativamente leve e é pequeno quando comparado às asas. Estas, são 4 asas distintas, embora alguns grupos tenham feito elas se aproxiamrem tanto que quando o animal está se movimentando parece que são apenas 2. Esta aproximação se dá pois há uma tentativa em Lepidoptera de possuírem asas com área de superfície muito grande quando comparado a área corporal. Este aumento na área facilitou o voo suave com paradas em flores de maneira sutil. Como são sugadores e não caçadores, não precisam de muita velocidade, mas sim estabilidade, sendo que algumas Lepidotera nem pousam na flor para sugar seu néctar.

A lagarta dos Lepidopteras são bem caracterísiticos. Como citado acima, eles, como na maioria das fases larvais, apresenat corpo mole. Eles comem muito depois da eclosão, e aumentam de tamanho muito mais rápido que outros animais chegando a multiplicar seu peso corpóreo em pouco tempo. Elas ingerem muita quantidade de matéria orgânica vegetal e isso é um sério problema em algumas palntações. Para evitar um paradoxo, é controaldo naturalmente a predação de folhas pelas lagartas, a produção de néctar oferecido aos adultos e a polinização das flores. De tamanho alimento ingerido, algumas espécies o adulto nem chega a se alimentar. Algumas possuem cerdas urticantes para a defesa, pois as larvs são muito predadas. Um lepidoptera tem que botar milhares do ovos porque a maioria não chegará à fase adulta. É visto também nas lagartas a presença de falsas pernas, apêndices mais parecidos com lobopódios que em pernas surgindo em diversos segemntos que auxiliam a locomoção destes bichos nos ínstares larvais que não possuem asas. As glândulas alivares porduzem seda que é usada para fazer o casulo.

Os Lepidoptera são muito importantes para a polinização de diversas flores. Um estudo histórico analisou a coevolução deste grupo. Ao ver uma flor com tubo polínico muito longo, Charles Darwin supôs que existisse um Lepidoptera com uma probóscide muito longa, muito maior que o seu corpo, para que fosse compatível com o tamnho do tubo polínico apresentado, mas ele nunca achou esse animal. Pesquisas futuras instalaram câmeras para ver a flor durante a noite, e surpreendentemente ela foi visitada por uma mariposa com probóscide jamais vista, garnde o suficiente para adentrar naquele tubo polínico. Isto mostra um grande feito na evolução, uma previibilidade de causas e consequências no mundo natural sendo os fenômenos mais absurdos explicados pela relaçaõ entre espécies.

Na esfera da evolução, outro fator marcante em Lepidopteras é o mimetismo. Principalmente nas borboletas neotropicais, mimetisar outras borboletas é muito comum. A maioria das borboletas imita uma coloração específica de uma espécie venenosa para diminuir a predação. Outro mimetismo comum é associar caracterísiticas etológicas ou biológicas do outro indivíduo não deixando apenas na imagem, mas na ação de fato. Isto ilustrou um grande debate entre Bates (defensor da primeira ideia) e Muller (defensor da segunda) e a aprimoração destes fatos, ambos muito comuns em Lepidoptera ajudou muito a compreender certos fenômenos natuarais evolutivos.

Figura 4 - Borboleta polinizando um girassol, Lepidoptera

Hemynoptera


Quem já comeu mel, ou tomou uma mordida de uma formiga lembra deste grupo. Hymenoptera quer dizer asas membranosas por esse grupo possuir 4 asas membranosas sendo as anteriores são maiores que as posteriores. Embora alguns representantes modificados deste grupo como as formigas operárias perderão esta capacidade de voar. O grupo inclui vespas, abelhas, formigas entre outros.

Eles possuem, em geral, peças bucais mastigadoras, ma spodem também ser sugadoras como em abelhas. Sua nutrição é variada e muito importante em alguns casos como a polinização de flores pelas abelhas. A coevolução de plantas e insetos é muito marcante. Algumas flores tem atartivos como cores e aromas para atrair insetos sendo um dos mais usados os Hymenoptera. Devido a baixas populacionais das abelhas, muitos agricultores tem importado Hymenoptera do mundo todo para não cair a produção agrícola. A importância ecológica dos Hymenopteras não se restringe às abelhas. Algumas vespas parasitarias de aranhas são um dos principais responsáveis pelo controle populacional de alguns hábitats destes araquinídeos. As formigas também são muito importantes pois elas podem predar as folhas de palntas de forma devastadora e um formigueiro pode destruir muito uma área da plantação.

Eles são facilemente identificados por ter a divisão entre o tórax e o abdômen muito bem marcada por um pecíolo, tal qual as aranhas, e que permite uma flexibilidade do abdômen independente do tórax. No abdômen, o ovopositor se desenvolveu muito. Em muitas espécies e grupos ele se desenvolveu em um ferrão. O ferrão é uma estratégia de defesa impressioanante; quem já teve o desprazer de ser ferroado sabe o quão doloroso ele é. Um aguilhão que além de perfurante pode inocular veneno é uma vanatgem adaptativa preservada em Hymenoptera. É também conhecido o fato de que se uma abelha ferroa, o ovopositor está tão conectado ao corpo, que ela perde junto o abdôemen, morrendo por consequência.

Esse ato da abelha muitas vezes interpretado como sem sentido, uam morte por tão pouco, tem suas explicações num conceito evolutivo ainda mais arraigado em Hymenoptera, a Eussocialidade. Esta é uam característica que agrupa os indivíduos mais do que um bando organizado, mas dimorfismos aparente para diferentes funções tal qual céluals diferenciadas para diferentes órgãos de um mesmo corpo. Esta não é única aos Hymenoptera, surge também nos cupins (Isoptera). Ela faz com que os indivíduos sejam muito transformados visando a perpetuação da espécie como perpetuação da colônia. O ato da abelha é ilustrado por seu conteúdo genético, que ela quer repassar, estará preservado nos parentes dela que estarão seguros na colmeia se ela afastar o perigo em potencial. O conteúdo dela está "impregnado" nas outras que sobreviverão. Este conceito é feito por ter só uam reprodutora, a rainha, que gera todos os indivíduos, sendo todos eles muito próximos geneticamente e auxilaindo a preservação do bem comum.

Teorias upões que a Eussocialidade tenah surgido independentemente em alguns grupos de Hymenoptera como em abelhas e formigas. O sucesso evolutivo proporcionado pela eussocialidade foram vitais para a irradiação dos Hymenoptera tal qual a coevolução. As colônias podem abrigar diversos indíviduos bem modificados controlados por ferormônios e são muito beme struturadas e protegidas como uma colmeia e um formigueiro. No formigueiro a morfologia dos indivíduos se distiguem muito fazendo com que as operárias perdesem suas asas e muitas atuando apenas na defesa. Estudos etológicos apontam que as colônias são uma expressão evolutiva de preservação do material genético antes até que a preservação do próprio indivíduo e a estruturação desse sistema resultou em uma vantagem evolutiva suficiente para deixar Hymenoptera como um grupo muito comum e cosmopolita.


Figura 5 - Colmeia com abelhas, Hymenoptera


Diptera


Diptera é uma ordem extremamente diversificada, e se expandiu para todos os continentes. Considerada uma ordem mega diversa pois se encontra em quase todos os lugares do mundo, até na Antártida, e em muitas espécies. Sua forma larval habita os ambientes aquáticos e isso faz com que Diptera seja um dos grupos mais bem estruturados ao ambiente aquático em Hexapoda. O unico "impecilho" é o mar aberto, embora alguns habitem regiões costeiras e mangues. Ela corresponde aos mosquitos, moscas, mutucas e mosquitões.
A ordem é formada quase sempre por animais pequenos, de corpo geralmente mole. Possuem também cerdas nas fossetas antenais (vibrissas) sensíveis a vibrações como órgão sensorial auxiliar. Seus tarsos possuem 5 artículos.
Diptera significa duas asas. Essa é uma regressão muito específica e caracteriza os dípteros. As asas traseiras são muito reduzidas e transformadas em pequenas estruturas clavadas denominadas halteres, que funcionam como órgãos de equilíbrio. Isto dá aos Diptera uma capacidade de voo muito eficiente com a regulação de equilíbrio oferecido pelos halteres. É notável que moscas possuem rápidos reflexos e o seu voo consegue ser direcionado com manobras muito rápidas. Estas manobras só podem ser realizadas com uma velocidade considerável com o uso do ponto de equilíbrio dado constantemente a cada pulso pelos halteres. As outras duas asas, para compensar a falta do outro par, são bem desenvolvidas. Membranosas, estas asas conseguem sustentar o voo destes insetos.
Outro fator que faz de Diptera responsável por grandes reflexos é o sue campo visual. Seus olhos compostos são muito complexos e muito desenvolvidos. Olhos grandes em relação aos outros insetos e com muitos omatídeos caracterizam as regiões cefálicas de Diptera. O campoo visual fica estendido e ela pode visualizar um predador de diferentes ângulos e escapar com facilidade. Agilidade, reflexos rápidos, voo estabilizado e grande campo visual permitiram aos Diptera uma menor predação e garantiram sua irradiação pelo mundo.
Suas larvas são vermiformes, sempre associadas aos substratos úmidos. As fêmeas ovipositam as larvas em locais adequados dentro de substrato. A larva pode ou não possuir cabeça, mas nunca tem apêndices torácicos muito desenvolvidos. A oviposição pode ser realizada em diversos meios como águas paradas, matéria orgânica em decomposição, sobre vegetais, frutos e tecidos vivos do homem e dos animais. Carnes em decomposição são um ótimo substrato para moscas e elas atuam como ótimos detritívoras e ajudam muito a reciclagem de nutrientes. A presença de determinados ínstares larvais em carne putrefata foi amplamente usada na ciência forense e ainda é um método usado. Isto faz o papel ecológico importante da introdução destes grupos em ambientes aquáticos no seu ínstar larval conquistando ambientes tanto marinhos como dulçaquícola. É bem reconhecido que a fase larval de espécies conhecidas habitam a água doce, sendo sempre usual campnahs para não deixar água parada para evitar que o Aedes aegypti, mosquito que difunde o vírus da dengue, possa se reproduzir.
A lembrança da dengue nos faz relembarr que esses animais são vetores de doenças. Dengue, malária, leishimaniose, elefantíase, doença do sono, entre outras são doenças perigosas transmtidas. Sua alta fertilidade faz com que muitas dessas doenças fiquem fora de controle e se tornem problemas sérios. Isto associou muitos Diptera como "perigosos" ou "malignos", mas eles tem importância ecológica muito importante. São excelentes controladores biológicas na terra, ar e água. Podem até fazer a polinização de importantes flores e é essencial a algumas plantações. São considerados os Hexapoda mais importantes para o homem em termos ecológicos e médicos.
A capacidade de transmitir doenças vem principalmente da capacidade de alguns Diptera de perfurar em busca de sangue. A capacidade de hematofagia dos dípteros é muito interessante até porque esse padrão bucal não é unanimidade entre os Diptera sendo muitos deles com peças bucais sugadoras. A transmissão de doenças se dá pelo contato do vírus ou outro hospedeiro com o sangue da vítima através do canal gerado pela peça bucal hematofágica.


Figura 6 - Tabanidae, Diptera


Figura A - http://nature.berkeley.edu/upmc/insectlist.php
Figura 1 - http://www.myrmecos.net/insects/Entb1.html
Figura 2 - http://www.baixandowallpapers.com/wallpapers/libelula-1343.html
Figura B - http://animais.culturamix.com/curiosidades/casulo-de-borboleta

Figura 3 - http://luciana-giacomelli.blogspot.com/2009/02/os-escaravelhos-e-o-corpo-enquanto.html
Figura 4 - http://fabiolaneves.blogspot.com/
Figura 5 - http://colmeiavirtual.blogspot.com/2007/06/uma-colmia-na-globosfera.html
Figura 6 - http://www.ub.edu/crba/practiques/artropodes/artropodes10b/artropodes10b.html


Bauplan de Arthropoda

Arthropoda é um grupo bastante sustentado por evidências morfológicas e moleculares e é grupo irmão de Onycophora e Tardigrada formando os chamados Panarthropoda. São caracteristicas dos Arthropoda a presença de quitina no seu exoesqueleto, a ausência de cílios utilizados para a locomoção, apêndices articulados, cefalização com cérebro tripartido, e tendência a tagmatização. Todos os Arthropoda fazem muda, ou seja, possuem um crescimento pontuado dado pela troca de seu exoesqueleto.

Figura 1 - Aranha (Chelicerata) em ecdise

O grupo é caracterizado por uma incrível diversidade, com espécies ocupando nichos ecológicos na água, na terra, e no ar. Os Arthropoda compõe mais de três quartos de toda a diversidade conhecida na Terra. Apesar de grande, essa diversidade é apenas fruto da modificação de padrões de tagmose (junção de segmentos) e apêndices em um plano básico relativamente estável.

O ancestral comum de todos os Atrhopoda provavelmente era um animal segmentado com apêndices em todos os segmentos depois do ácron. Estes apêndices eram birremes e estruturalmente semelhantes (como observado em Trilobitomorpha, embora o grupo fóssil já seja fruto de alterações no plano básico). A hipótese da origem comum dos apêndices em todos os grupos de Arthropoda nos permite comparar estruturas entre os grupos, por exemplo os apêndices do terceiro segmento de todos os Arthropoda serão homólogos entre si. A ontogenia dos vários grupos suportam esta homologia, que recebe o nome de homologia serial. Para a homologia serial não se usam o primeiro segmento pré-oral (ácron) nem o último segmento pós-anal (télson).

A excessão dos Cheliceromorpha, todos os Arthropoda possuem antenas no segundo seguimento pós-ácron. Como muitas das variadas estruturas dos Arthropoda, as antenas são apêndices modificados que, neste caso, possuem função sensorial. Em Crustacea há dois pares de antenas que se conservam birremes, em concordância com o que se acredita ser o padrão dos apêndices do ancestral comum de todo o grupo.

Vale a pena chamar atenção para o fator temporal dos cenários evolutivos: não é possível falar sobre função dos apêndices em Arthropoda sem uma contextualização adequada. No ancestral comum do grupo os apêndices eram provelmente menos especializados, e por isso se prestavam a todas as funções a que os apêndices especializados se prestam nos variados grupos atuais, isto é locomoção, reprodução, alimentação, defesa e como órgãos sensoriais.

(a) (b)

Figura 2 - (a) Apendice generalizado de um Arthropoda e (b) Queliceras de Aracnida, uma profunda modificação nos apêndices que ganharam enditos mais longos e perderam o telopodito.

Estruturalmente os apêndices do grupo são formados por uma base chamada protopodito, que por sua vez pode estar dividida em coxopodito e telopodito. Do coxopodito sai uma estrutura também articulada, como um exito da epicoxa (parte superior do coxopodito), ou exopodito. Este exito dá origem as brânquias dos Crustacea, por exemplo, e segundo a hipótese exito ou branquial dão também origem as asas dos Pterygota. Há outra estrutura originária do coxopodito, não articulada, e que se projeta em direção ao corpo do animal: os enditos. No ancestral comum dos Arthropoda os enditos eram provavelmente usados como gnatobases, ou seja, para a trituração e maceração de alimentos antes de serem ingeridos. A origem das queliceras dos cheliceriformes e mandibulas dos Mandibulata pode ser explicada com uma redução do telopodito nos apêndices pós-ácron, e um desenvolvimento maior do endito.

Quanto a tagmose, esta era provavelmente fraca e limitada a uma cabeça e tronco no ancestral comum de todos os Arthropoda. Esta visão do ancestral comum pode suportar morfologicamente a hipótese Pancrustacea para a resolução das relações evolutivas entre os grupos dentro de Mandibulata, pois nela Crustacea deixa de ser um grupo monofilético e apresenta grupos como Remipedia e Cephalocarida que pouco se modificaram em relação ao padrão do ancestral comum, ao menos em termos de tagmose. Myriapoda também tem padrão de tagmose semelhante com apenas cabeça e tronco. Nos grupos atuais há sempre uma união dos segmentos da cabeça, em Cheliceromorpha esses se unem a alguns segmentos do tronco para formar o prossoma, ou cephalotórax. O restante do corpo dos Cheliceromorpha é unido em um tagma terminal chamado opistossoma. Em Hexapoda o tronco é dividido em tórax (com três segmentos) e abdômem, enquanto que em Crustacea os padrões de tagmose são bastante variados.

Figura 3 - Abelha (Insecta) com o padrão de tagmose de Hexapoda em evidência

O grupo nos permite questionar o quão fácil ou dificilmente podem se dar as mudanças estruturais nos Metazoa, dada a diversidade de funções que assumem as mesmas estruturas ancestrais em todos os Arthropoda. O uso de pesos em alguns caracteres quando se roda uma matriz de dados morfológicos pode ser defendido se pensarmos que determinadas modificações ocorrem mais facilmente que outras, como ocorreram as especializações de apêndices nos Arthropoda. Estas especializações também nos mostram que a evolução não é um processo linear, visto que não há uma estrutura superior a outra em termos de complexidade, mas sim estruturas mais ou menos adaptadas a uma função que, no caso dos Arthropoda, são homólogas e as vezes bem semelhantes estruturalmente.


Figura 1 - http://www.herpetofauna.x-br.com/Invertebrados4.htm

Figura 2 - http://www.cals.ncsu.edu/course/ent425/text02/arthropods.html

Figura 3 - http://www.imago.ufrj.br/glossario/GEB/glossario.insecta.tv.htm


segunda-feira, 8 de agosto de 2011


Bauplan de Crustacea

Figura 1 – Camarão muito cultivado em costas brasileiras


Crustacea é um grupo com maior diversidade morfológica nos Metazoa. Eles alcançam diversos ambientes dos mais diversos. Pode ser ver mais sobre a diversidade deste grupo tão especializado e modificado aqui.

Por tamanha diversidade é muito difícil adimitir o que é o Bauplan de Crustacea. Cada grupo é muito específico e muito modificado em relação aos outros grupos e até dentro dele mesmo. A filogenia dos crustáceos é muito controvérsia, fazendo com que o Ur-Crustacea seja muito discutido e não sendo unanimidade entre os carcinólogos. Até algumas ordens foram tardiamente incluída em Crustacea devido aa sua morfologia aberrante. Mas se pode tirar generalidades a respeito da morfologia desse grupo.

Os Crustacea trazem simplesiomorfias como cérebro tripartido, ecdise, apêndice articulado. Eles pertencem aos Mandibulata, grupo de artrópodes que apresentam mandíbula no terceiro segmento e maxilas no quarto. Além de mandíbula, eles possuem também antenas no primeiro segmento cefálico. Os ancestrais teriam cabeça e tronco com segmentação mais ou menos homogênea. O Ur-Crustacea portaria um sulco ventral pelo qual os alimentos vão até a boca. Seus apêndices birremes (ou multirremes) apresentavam gnatobases salientes, o que é bem pronunciado nas mandíbulas, que se trata de apêndices modificados. Tagma envolve cabeça com 6 segmentos, péreon (tórax) com 8 segmentos e pléon com 6 segmentos.

O Ur-Crustacea porvavelmente epibentônico. Surge apêndices do tipo filopódio que permite gerar correntes na água propiciando levar alimento à boca que estavam em suspensão. Crustacea tem dois pares de antenas; essa característica única faz claramente distinguir crustáceos de outros artrópodes. Dois pares de nefrídeos saculiformes realizam a excreção por amônia. Um se dá na base do segundo par de natenas e outro próximo ao segundo par de maxilas.

Em muitos crustáceos, surgem uma carapaça. Ela é uma dobra da pele que recobre a cabeça e alguns segmentos do tronco. Estes segmentos do tronco que forma juntados ao cefalotórax tem seus apêndices transformados em maxilípedes, que auxiliam a alimentação. Mas essa carapaça pode estar ausente ou recobrindo todo o corpo. A Boca abre-se ventralmente e o trato digestivo é quase sempre apresentado em forma de “J”. Maioria distingue os dois sexos, mas há hermafroditismo comum. A fertilização quase sempre interna. Está presente um télson e urópodes fazendo um leque caudal.

A principal sinapomorfia desse grupo ainda é a presença de larva naupliar. O Náuplio é a larva que surge depois da eclosão do ovo quase sempre panctônico. Esse ínstare larval pode ser modificado nas diversas classes de Crustacea, como pode virar a larva cipris em Cirripedia,mas essa larva é uma característica marcante. Essa característica faz com que as cracas fossem identificadas como sendo crustáceos, porque apresentavam larva náuplio, mesmo com morfologia muito distinta. Os olhos de crustáceos são compostos semelhante à Hexapoda. Há apresença de ocelos medianos frutos do olho naupliar. Este olho tem 3 ou 4 ocelos em forma de taças pigmentares com fotorreceptores.

Seu exito é normalmente associado à brânquias fazendo de Crustacea o grupo quase que totalmente marinho e praticamente aquático. Sua respiração manteve-se ligado ao sitema branquial e confinando o animal a ambientes úmidos. Isto mostra que aniamis que vivem em terra firme, como o tauzinho-de-jardim, não precisa obrigatoriamente mudar seu sistema por completo, mas sobrevive com algumas modificações. Mostrando que a evolução não é linear e obrigatória, mas funciona como uma série de mudanças sutis, adaptações do existente, reforma mais do que constroe.


Figura 2 – Larva Náuplio, sinapomorfia de Crustacea.


Figura 1 - http://www.terra.com.br/revistadinheirorural/edicoes/45/artigo96141-1.htm

Figura 2 - Proyecto Agua, Antonio Guillén, http://picasaweb.google.com/114135116934784031583/FRITZMULLERBannerN14#5506732379577928818


sábado, 6 de agosto de 2011

Onychophora

Animais simpáticos, coloridos e com textura aveludada, os onicóforos são um grupo formado por espécies terrestres de seres cujos fósseis datam já do período Cambriano. Em conjunto com o subgrupo dos tardígrados e artrópodes, os Onychophora formam os Panarthropoda. Embora a maior parte de suas características os coloquem mais próximos de Arthropoda, muitas estruturas desses animais estão intimamente ligadas com Annelida, o que faz esse grupo ser associado a hipótese Articullata.

Onicóforos vivem em ambientes úmidos e são de pequeno porte (variam de 5 mm à 15 cm). Possuem o corpo internamente segmentado, coberto por uma fina e maleável cutícula de quitina, da qual sofre mudas periódicas, característica que dá nome ao grupo Ecdysozoa, do qual pertence. A maleabilidade dessa cutícula, associada ao corpo mole de músculos distribuídos de forma semelhante as de Annelida, fazem com que o animal consiga se espremer em locais pequenos.

A segmentação em Onychophora é homônoma. Na cabeça encontram-se o par de antenas, um par de mandíbulas (que se encontram em maior número no caso dos artrópodes), papilas orais (estruturas que portam glândulas de muco, de onde o animal lança uma substância adesiva que o auxilia na caça), boca circundada por lábios e um par de olhos, localizados na base das antenas. Se alimentam de pequenos invertebrados, e há um par de nefrídios em cada segmento (exceto o segmento que apresenta a abertura genital), para a excreção, esses nefrídios terminam em nefridióporos.

Os segmentos seguintes ao da cabeça também são dotados de estruturas locomotoras não articuladas e sem musculatura intrínseca, os lobópodes, presentes de 13 a 43 pares. No final dos lobópodes existem garras, característica que dá nome ao grupo (onicóforo significa "portador de garras"). A locomoção se dá por contrações do corpo, que erguem os segmentos e movem o animal para frente. Os onicóforos podem ser ovíparos, vivíparos ou ovovivíparos, e, exceto por uma espécie, todos são dióicos, ou seja, os sexos são separados, macho e fêmea.

O sistema nervoso desses animais é em escada de corda, algo parecido com anelídio e artrópode. Possui cordões ventrais e um glânglio cerebral sobre a faringe. A superfície do corpo é coberta de cerdas sensoriais. Quanto ao sistema respiratório, os Onychophora possuem traquéias que terminam em espiráculos, assim como em artrópodes terrestres no geral, porém de forma não homóloga aos mesmos, tendo surgido de maneira independente em cada um dos grupos. São gonocóricos, com dimorfismo sexual e apresentam fertilização interna, podendo ser ovíparos ou vivíparos.

quarta-feira, 3 de agosto de 2011

O Cays Doze

A figura do Cais ilustra bem a forma da ciência atual. Num cais, diferentes navios, vindos de diferentes lugares, com bagagens diferentes se encontram e de certa forma trocam informações. Mas o melhor é que eles não param ai, eles saem, retomam suas rotas, criam novas rotas, com novas bagagens. A ciência nada mais é que o encontro e troca de culturas para orientar os novos caminhos. Esta é a proposta deste site, fazer com que as pessoas cheguem, adiquiram conhecimento sobre os Ecdysozoa para poder tomar seus próprios rumos.
O nome "O Cays Doze" é assim escrito por ser um anagrama da palavra Ecdysozoa, o assunto deste site.

segunda-feira, 1 de agosto de 2011


Tardigrada


Uma ida ao espaço é sempre motivo de atenção à mídia, principalmente no último vôo de um ônibus espacial. Em maio de 2011, o último vôo do Endeavour levou várias pesquisas para se realizar no espaço, uma delas envolvia os Tardigrada1. Há um bom motivo para tal, os Tardigrada são animais com capacidades de resistência impressionante. Eles sobrevivem à temperaturas muito próximas ao zero absoluto, como também altíssimas temperaturas e grandes pressões. Esta capacidade chamada de Criptobiose faz com que sua resistência seja única entre os animais. Mas o principal fator que o faz importante em pesquisas científicas é que sua criptobiose o faz sobreviver ao vácuo espacial tal qual o seu ovo. Ele “desliga” seu metabolismo e desidrata de forma a suportar condições totalemente contrárias à vida como conhecemos.

Figura 1 - Ilustração da resistência dos Tardigarda ao Espaço


A resistência é feita puxando suas pernas para dentro, perdendo água para fora e secretando um envelope de dupla cutícula sobre o corpo desidratado. Seu estado dormente resiste à temperaturas de 149ºC a -272ºC. Resiste também à substâncias tóxicas (salmoura, éter, álcool liquido), vácuo, radiações ultravioletas e ausência de oxigênio. Sua anabiose (dormência do metabolismo) pode superar limites imagináveis; faz por exemplo uma espécie da Groelândia, Halobiotus crispae, ter várias “conformações” para diferentes épocas, como um modo de sobreviver às estações secas, chuvosas, frias e quentes, de maneira distinta

Figura 2 - Várias conformações de Halobiotus crispae


O nome Tardigrada remete à sua lentidão em andar (do latim tardus, “lento”; gradus,”passo”). São normalmente apelidados de “ursinhos d´água” pela aparência parecida com ursos; seu “carisma” visual também atrai interesses importantes.

Um dos fatos ainda mais surpreendente a respeito dos Tardigarda é que eles são muito comuns. Talvez explicado pelo seu tamanho pequeno e seu leve, mas resistente ovo ser transposto facilmente à grandes distâncias. Seu tamanho reduzido não impedem no entanto sua ampla distribuição. Em uma análise em um microscópio da água de qualquer lugar, é possível, com um pouco de sorte, achar um Tardigrada. Sua densidade média em musgos são aproxiamdamente 2000000 por metro quadrado. Eles são animais muito pequenos, os maiores adultos medem 1,5 mm e os menores alcançam 0,05 mm. Água de poços, lagos e riachos são lugares muito propícios a acharem Tardigarda, assim como sobre os musgos, mas seu tamanho diminuto os faz passar muitas vezes “despercebido”.

Figura 3 - Tardigarda sobre o musgo


Os Tardigradas são incluídos no grupo Panarthropoda por possuírem características como apêndices articulados dispostos em 4 pares de pernas com garras. Eles possuem ecdise marcante e cérebro tripartido, reforçando sua posição em Ecdysozoa. Em Panarthropoda, sua situação está definida pela presença de estilete, órgão perfurador que permite perfurar caules e se alimentar da seiva. Eles também possuem musculatura complexa e túbulos de Malpighi.

Seu pequeno tamanho também aponta que ele sofreu várias regressões. O tamanho reduzido inutiliza sistemas como circulatório e respiratório por ser a difusão o principal agente dissipador. O principal indicador é a ausência de um coração, uma simplesiomorfia presente desde Bilateria.

Há presença de sexos separados e a fecundação é interna, sendo os ovos depositados na exúvia da fêmea com desenvolvimento direto.

Figura 4 - Varredura de um Tardigarda mostrando sua lateral


Suas pernas são extremamente curtas e ocas. Mas elas são mais articuladas que os lobopódiso dos onicóforos. Principalemnte o fato de tereme musculatura intrínseca. Sua musculatura envolve músculos lisos e estriados, diferentemente de anelídeos e aproximando mais da hipótese Panarthropoda do que da hipótese Articulata. É consenso de alguns autores aceitar uma cefalização em Tardigrada. Seu interior tem celoma reduzido, seguindo uma simplesiomorfia que tem seu melhor representante nos Hexapoda. Suas garras servem para fixá-los no substrato, como em algas,musgos e superfícieis sólidas à flor da camada de água.

Figura 5 - Ilustração de um Tardigrada ventralmente


1 - NASA Staff (2011-05-17). BIOKon In Space (BIOKIS)

Figura 1 - https://blogger.googleusercontent.com/img/b/R29vZ2xl/AVvXsEhT00muUOowZpaDt74XE-vQjK3QJZy0t3Lxo-kQWSF0ejA0w1q8USC65D9bAKbTJDaGacxZG-bPGPvjT7qhs9fmynFhhNNz9gZI5PI8xt_PLoWplhM70HhaeXtxtoKvpnC00SPwzBZPYdI/s1600/tardigrada_espacio%5B1%5D.jpg

Figura 2 - http://www.diagonale-groenland.asso.fr/greenland_tardigrada.htm

Figura 3 -http://www.imagegossips.com/2011/01/tardigrada-pictures/

Figura 4 - https://blogger.googleusercontent.com/img/b/R29vZ2xl/AVvXsEhHASFPupkUezKAInLWF4W4W1Ie3V5n69_H-Zf3A06OQ5kdJNw6tvxDczoBX7fUXDgjMnocnvggHt7Bv5fT_WGJYJl4mPN6mh0HfQlLKFVCToDZe-2SRUVTDao7x-ADYMPqkbo7YAjC1eL9/s1600/tard%C3%ADgrado.jpg

Figura 5 - http://www.eoearth.org/files/123501_123600/123597/200px-Tardigrada.jpg